原论文:Arthropod Origins:Integrating Paleontological and Molecular Evidence
引言
重建古老而物种丰富的动物门类在起源阶段的演化路径,是一项复杂的谜题。节肢动物尤为典型:它们今日的惊人多样性,以及跨越五亿多年的化石记录,使这一问题更加突出。现生节肢动物逾百万种,约占已知动物多样性的 85%。寒武纪特异埋藏化石库(布尔吉斯页岩型生物群)显示,节肢动物不仅是其中最常见的化石,更是在动物演化黎明之际便已最为多样的门类(Fu et al. 2019)。
构建一棵稳健而完整的节肢动物演化树,必须整合分子系统发育学与古生物学。两者之间的纽带是形态学——对绝大多数已灭绝类群而言,形态特征是唯一可用的性状来源。节肢动物的几丁质外骨骼(有时具生物矿化)赋予其高化石保存潜力;分节、模块化的身体结构,加上不同体节或区域具特化附肢,为系统发育研究提供了丰富的形态信息。尽管化石只能提供重建节肢动物系统发育所需特征的一小部分,它们却带来了因灭绝而消失的独特性状组合,并为标定分子时间树提供了必需的时间维度。
节肢动物的起源与早期演化,与埃迪卡拉纪—寒武纪过渡期及寒武纪早期全新动物身体构型的出现紧密相连。新的化石发现,加上定量系统发育方法的广泛应用,使我们得以在寒武纪识别出节肢动物及其在蜕皮动物(Ecdysozoa)内的众多近亲。古生物学独一无二地证明,节肢动物及其最近的现生近亲——有爪动物和缓步动物——只是蜕皮动物中幸存至今的三个谱系;这些动物皆有环节状身体和环节状附肢,却在体节表皮结构和头部附肢排布上表现出极大差异。节肢动物的起源就位于这一统称为“叶足动物”的演化级序之中。化石同样揭示了节肢动物众多共有衍征的获得顺序。
节肢动物作为蜕皮动物
2000 年代初期到中期,学界曾就节肢动物与其他动物门类的系统发育位置展开激烈争论。节肢动物与有爪动物亲缘关系密切的传统观点并未受到质疑,但问题在于:它们究竟是更接近其他具分节体构的原口动物,还是更接近所有具蜕皮现象的动物?前者构成“体节动物假说”(Articulata),将节肢动物(及有爪动物)与环节动物归为一类,可追溯到 19 世纪;后者即“蜕皮动物假说”(Ecdysozoa),源自 18S rRNA 的系统发育分析(Aguinaldo et al. 1997)。在体节动物与蜕皮动物之争中,环节动物与节肢动物体节同源性的辩护基于二者体节内部亚单元的相似结构(Scholtz 2002)。体节动物的支持者则批评 Ecdysozoa 所依据的形态特征(多与表皮及其蜕皮相关)(Schmidt-Rhaesa et al. 1998),并质疑当时仅基于少数基因位点的分子结果。早期还有“体腔动物假说”(Coelomata)将节肢动物与脊索动物归为姊妹群、排除线虫,但后来被摒弃,蜕皮动物假说得到广泛接受(Holton & Pisani 2010)。
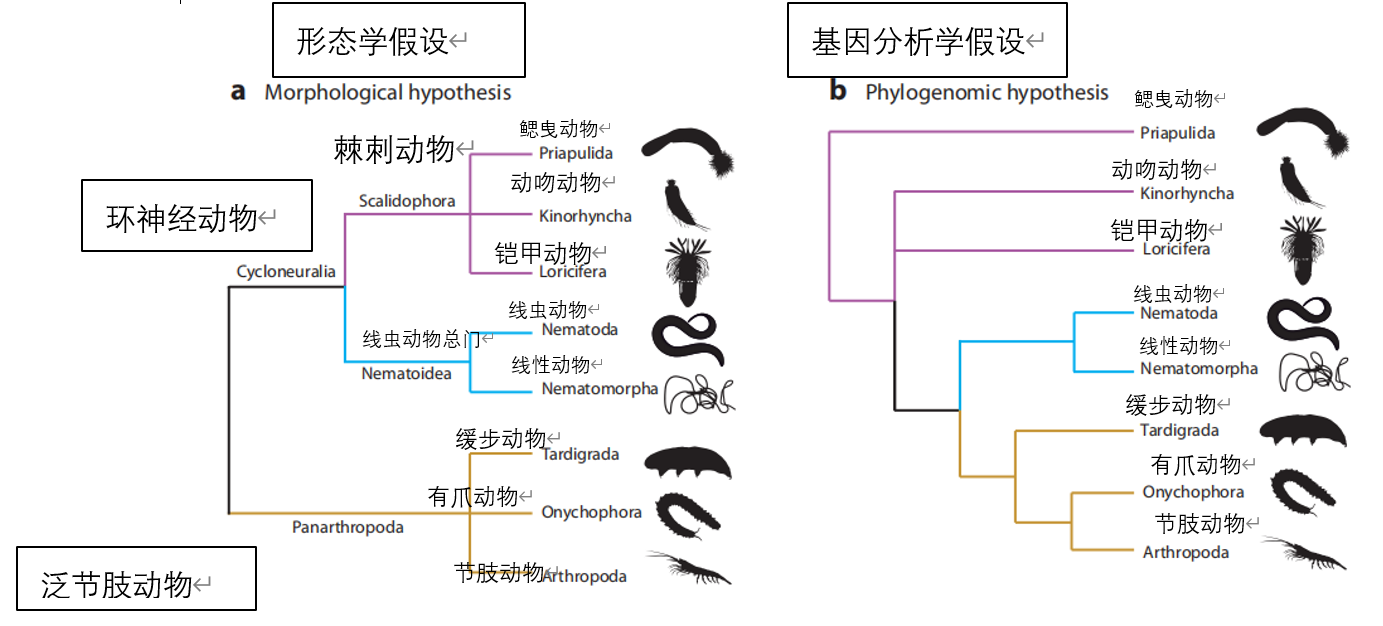
图 1 蜕皮动物系统发育图,显示节肢动物在蜕皮动物类群中的位置:
(a) 形态学假说,其中环神经动物(Cycloneuralia)和棘刺动物(Scalidophora)均为单系群;
(b) 基因组系统发育假说,其中环神经动物和棘刺动物均为并系群。
图 1 展示了两种对立的系统发育框架:(a)形态学假说,其中环神经动物(Cycloneuralia)与动吻动物(Scalidophora)皆为单系;(b)系统发育基因组学假说,二者皆呈并系。随着分子数据持续支持蜕皮动物单系,并将环节动物置于具螺旋卵裂的螺旋动物(Spiralia)及其下的担轮-触手冠动物(Lophotrochozoa)中,体节动物与蜕皮动物的争论在过去十年已趋于平息。
蜕皮动物内部的亲缘关系
尽管蜕皮动物(Ecdysozoa)的单系性获得了极为广泛的支持,但其八个门之间的相互关系却出奇地难以确定,这种不确定性影响了我们对节肢动物最近缘类群的判断(综述见 Giribet & Edgecombe 2017)。形态学家在 20 世纪 90 年代中期已识别出蜕皮动物内部的三大主要分支:棘刺动物(Scalidophora)、线形动物(Nematoida)和泛节肢动物(Panarthropoda)(图 1a)。
- 棘刺动物 包括曳鳃动物门(Priapulida)、动吻动物门(Kinorhyncha)和铠甲动物门(Loricifera),其名称来源于“棘”(scalid)——一种位于可外翻或伸缩的体前端(即“翻吻”introvert)上的短刺;这些棘由单纤毛感觉细胞的纤毛受体构成。
- 线形动物 包括线虫动物门(Nematoda)和线形动物门(Nematomorpha)。
- 泛节肢动物 包括缓步动物门(Tardigrada)、有爪动物门(Onychophora)和节肢动物门(Arthropoda)。
形态学证据支持棘刺动物与线形动物联合为“环神经动物”(Cycloneuralia),依据是二者均具有环绕食道的“领状”神经环(collar-shaped circumesophageal brain);这与泛节肢动物的“背神经节脑”形成对比。泛节肢动物的单系性则得到以下特征支持:成对的体节腹外侧附肢,以及一种共同的体节模式形成机制——发育中的体节后部外胚层表达节极性基因 engrailed(Gabriel & Goldstein 2007)。
线形动物(Nematoida)的单系性在形态学上得到广泛支持,例如其角质层具有交错排列的胶原纤维层,且缺乏环肌。然而,线形动物门(Nematomorpha)的分子数据极为有限,这导致一些令人意外的分子结果——如线虫与铠甲动物(Loricifera)或缓步动物(Tardigrada)的近缘关系——可能受到线形动物数据不足的干扰。
棘刺动物(Scalidophora)在分子分析中几乎从未被恢复为单系群(图 1b),尽管需注意动吻动物(Kinorhyncha)和铠甲动物的基因组规模数据同样稀缺。在棘刺动物非单系的背景下,曳鳃动物(Priapulida)有时被解析为所有其他蜕皮动物的姊妹群,而铠甲动物则与线形动物聚为一支(Laumer et al. 2019)。
泛节肢动物(Panarthropoda)也多次在分子树中受到挑战:缓步动物往往与线虫或整个线形动物支系成群,而非与有爪动物和节肢动物共同构成单系。
环神经动物(Cycloneuralia)同样几乎从未被分子数据支持(图 1b),反复出现的模式是线形动物与泛节肢动物的关系比其与棘刺动物更近(Campbell et al. 2011, Borner et al. 2014, Marlétaz et al. 2019)。然而,这一分组缺乏显著形态学证据,可能由快速演化的线虫与缓步动物之间的长枝吸引所致。
部分基于形态学的蜕皮动物系统学与分子系统学之间的差异(包括棘刺动物与环神经动物的地位)涉及的是树根位置的不同,而非拓扑结构本身的冲突。此外,若干不稳定门类要么采样不足,要么仅有 Sanger 测序数据或低质量转录组。解决这些问题至关重要:
- 它关系到泛节肢动物的分节特征(如分节附肢和神经节)是单次起源、在线形动物中二次丢失,还是在缓步动物与节肢动物间趋同演化;
- 同样,环神经动物的单系性与并系性直接影响我们如何解释“领状脑”与“背神经节脑”之间的演化序列,以及二者何者更可能是蜕皮动物的祖先状态(Martín-Durán 等 2016)。
早期蜕皮动物化石
化石证据表明,寒武纪地层中已出现若干蜕皮动物冠群的成员。这一点对节肢动物最为明显,但同样适用于曳鳃动物(Priapulida;Ma et al. 2014),甚至令人惊讶地也适用于铠甲动物(Loricifera;Harvey & Butterfield 2017)。
遗迹化石记录把蜕皮动物的出现追溯到寒武纪最早期:寒武系底界标准化石——Treptichnus pedum 的潜穴行为,被令人信服地归因于一种类似曳鳃动物的棘刺动物(scalidophoran)所留(Kesidis et al. 2019)。
最早的蜕皮动物实体化石是出现在寒武纪幸运阶(Fortunian Stage)的多种棘刺动物,包括:
- 被归入 Markuelia(寒武纪化石胚胎)属的二次磷酸盐化胚胎(Dong et al. 2010);
- 磷质保存的完整个体,如宽川铺生物群(Eopriapulites)与始祖动吻虫(Eokinorhynchus)(Liu et al. 2014, Zhang et al. 2015);
- 以及以碳质薄膜保存的小钩、齿和棘等微体化石,其精细形态可与曳鳃类棘刺动物(如奥托虫)的完整个体直接对比,从而得以鉴定(Slater et al. 2017)。
这些早期出现的曳鳃类形态与分子证据一致:曳鳃动物(Priapulida)在棘刺动物等级中属于较早分化的支系。
节肢动物及其泛节肢动物亲缘关系
缓步动物(Tardigrades)的地位
理解节肢动物的起源取决于有爪动物和缓步动物与节肢动物的亲缘关系。两个关键争议使这个问题变得复杂:
- 分子证据 支持缓步动物与线虫动物之间的亲缘关系,这与泛节肢动物单系群的假说相矛盾。
- 神经解剖学证据 支持缓步动物与节肢动物的亲缘关系,这与分子证据支持的有爪动物-节肢动物类群(排除缓步动物)相矛盾。
早期转录组规模分析探讨了缓步动物与其他泛节肢动物或线形类群聚的条件,结论是在更适合的替代模型和更密集的分类采样下,前者获得了更强的支持(Campbell 等 2011)。一种新型 microRNA 被提出作为泛节肢动物单系性的额外证据,而与线虫类群的亲缘关系则被解释为系统树重建方法的假说(Campbell 等 2011)。然而,随后的几项系统基因组学研究仍然支持缓步动物与线虫动物类群的聚类关系(Borner 等 2014),或者在不同的分析条件下支持这一关系或支持泛节肢动物假说。在后一种情况下,采用位点异质性模型的分析使证据更倾向于支持泛节肢动物(Laumer et al. 2019;参见图 1b)。
在泛节肢动物(Panarthropoda)单系性的框架下,节肢动物的姊妹群要么是有爪动物(Onychophora),要么是缓步动物(Tardigrada)。分子数据集明确支持前者,尽管缓步动物与线虫之间的亲缘吸引可能虚假地将前者拉向泛节肢动物的基部。如果有爪动物与节肢动物为姊妹群,则它们的最近共同祖先应具备血腔式循环系统和具有分节开口的背侧心脏,这两个特征在这两个门类中均有出现。然而,这一特征并不能完全令人信服地作为有爪动物-节肢动物类群的独有共衍征,因为缓步动物缺乏心脏很可能与其体型微型化有关。
相比之下,缓步动物与节肢动物之间的另一种姊妹群关系则得到了它们腹神经索中具有分节神经节(而有爪动物的神经索则无神经节)的支持。更具体地说,缓步动物与节肢动物的神经节在位置上均发生了移位,与副体节(parasegment)边界对齐,并且它们共享一系列具有免疫反应性的重复神经元群(Mayer 等 2013)。这些特征被引用作为支持缓步动物与节肢动物组成一个类群的证据,即所谓的 Tactopoda(序足动物)(Smith & Ortega-Hernández 2014)。
头节(Head Segments)的对齐
所谓的“节肢动物头部问题”(arthropod head problem)是指如何将节肢动物头部的不同体节结构进行同源比对。在现生节肢动物中,许多争议已通过 Hox 基因表达域与神经解剖结构的一致性信号得以解决。尤其值得注意的是,螯肢亚门(Chelicerata)的螯肢与有颚亚门(Mandibulata)的触角,均被确认为三段式脑部中第二段(即后脑,deutocerebrum)的附肢,从而确立了其体节同源性。
Hox 表达数据进一步将缓步动物(Tardigrada)中具有成对运动附肢的四个体节,与有颚类节肢动物的头部体节进行了同源比对(Smith 等 2016)。同样,基因表达与神经解剖也解决了泛节肢动物三个门类脑部体节构成的一些关键问题。目前普遍认为,缓步动物的脑部仅由一个神经节(neuromere)构成,该神经节与节肢动物的前脑(protocerebrum)同源(Gross & Mayer 2015;Smith 等 2018)。如下文所述,早期分化的干群节肢动物 Kerygmachela 似乎也共享这一特征(Park 等 2018)。相比之下,有爪动物(Onychophora)则将相当于后脑(deutocerebrum)的神经节整合进了脑部(Mayer 等 2010),而节肢动物的脑部则为三段式(前脑、中脑、后脑)。
寒武纪化石在节肢动物头部问题中也占据重要地位(Budd 2002;Scholtz & Edgecombe 2006;Richter 等 2013;Ortega-Hernández 等 2017)。该问题的核心在于,如何将这些化石中形态独特的附肢(如干群节肢动物的前掠型额附肢)与现生节肢动物头部的体节附肢进行对应。
叶足动物
在包含化石的泛节肢动物系统发育树中,存在一个一致模式:被称为叶足动物的过渡类群,既包含泛节肢动物三大门类的姐妹群,也包含这三大门的最后共同祖先。叶足动物在寒武纪 BST 生物群中以众多属的形式出现(Ortega-Hernández 2015)。所有物种均具基本蠕虫状的环节躯体及众多称为多足肢的环节附肢。部分物种背腹表皮具节段排列的甲壳结构,可能为网状板(Microdictyon)或细长棘刺(Hallucigenia),而另一些则无甲壳(Paucipodia)。大量形态学系统发育分析曾致力于厘清叶足动物的亲缘关系,尽管诸多观点存在争议,但现存泛节肢动物三大门类的基干类群均已获得对应候选物种。
具体而言,系统发生分析证实艾氏动物属于缓步动物的茎群(Caron & Aria 2017),这与数十年前伯吉斯页岩(Burgess Shale)中的艾氏动物(A. pedunculata)与缓步动物共享的若干特征相符,例如:末端口器周围环绕乳突,以及末对附肢爪部相对于前附肢爪部的方向逆转。若艾氏动物确属缓步动物干群,则暗示缓步动物的原始形态具有多对环节状多足肢(而非伸缩式或关节式腿部)及具乳突的环节状躯干——这些特征与有爪动物共享。这些共同特征与泛节肢动物最后共同祖先的起源表现出的特征相符,正因此,缓步动物与泛节肢动物而非线虫动物亲缘关系更近的观点得到了更进一步支持。
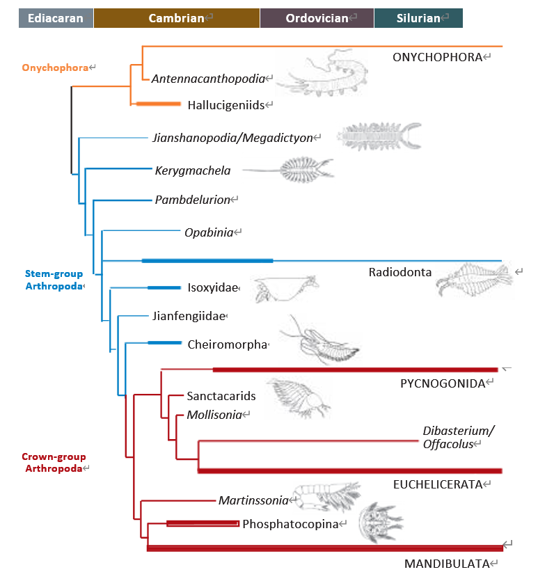
图 2 有爪动物门与节肢动物门干群分支序列假说。按惯例,幽灵谱系(为衔接已知化石与其姐妹群而必须假设存在的、但尚未发现化石证据的演化支)被最小化。
有爪动物总群以橙色标示,节肢动物干群以蓝色标示,节肢动物冠群以红色标示。粗线代表物种群的时间范围;细线指仅在单一时间点有记录的单一物种或物种群。代表性化石的生物复原图位于分类单元名称右侧。底部七幅化石图示改编自 Legg 等人(2013)。
其他寒武纪叶足动物被解释为有爪动物门干群(图 2),该假说的一种表述认为怪诞虫(Hallucigenia)及其近亲的背腹棘与爪的构造及生长模式,与有爪动物的颌部和爪具有同源性(Smith & Ortega-Hernández 2014)。这种结构涉及堆叠元素,外层在蜕皮时脱落,由其下层立即取代。其他系统发育分析则质疑将怪诞虫及其他装甲叶足动物(如罗里山虫类 luolishaniids)定位为有爪动物总群基干类群的观点(杨等 2015),转而将其归入泛节肢动物总群基干类群(Caron & Aria 2017, Aria et al. 2019)。在寒武纪叶足动物中,最被广泛认可的有爪动物总类成员是澄江生物群的细叶棘足虫(Antennacanthopodia gracilis),其触角与带肉垫的粗壮多足结构与现生有爪动物高度相似(Ou 等 2011)。
最后,在若干系统发育分析中,一批大型叶足动物被认定为节肢动物谱系中分化最远的成员。这类巨型叶足动物以华南早寒武世澄江生物群的华丽尖山多足虫(Jianshanopodia decora)及其近缘种海口巨多足虫(Megadictyon haikouensis)为代表(刘等 2006, 2007),以及西伯利亚早寒武世新克里米亚组(Sinsk Formation)的西伯利亚列纳巨足虫(Siberion lenaicus)(Dzik 2011)。
分子系统发生学与节肢动物谱系树的骨干(下期预告)
分子系统学发展的最初十年,由于分析仅限于少数几个基因座,导致主要节肢动物类群内部的亲缘关系呈现多样化、有时相互矛盾且证据薄弱的状态。当时最常用的标记物包括核糖体核基因、少数核编码蛋白基因以及线粒体基因组。然而该时期部分研究成果经受住了时间考验,例如六足动物与甲壳类亲缘关系更近于多足类的假说。这一泛甲壳类(Pancrustacea 或 Tetraconata)假说虽在二十世纪初获得神经解剖学家支持,却在随后的数十年间遭普遍忽视。整个时期内,形态学家则更倾向于支持六足动物与多足动物(即无节肢动物门假说)的亲缘关系,认为它们拥有共同的陆生祖先。无节肢动物门假说至今仍获得部分形态学研究者的支持(Wägele & Kück 2014),因该分类群具备诸多独特的形态学特征作为佐证。然而,过去 25 年间大量分子分析数据均明显指向甲壳类作为六足动物门根部的过渡类群,与该假说形成矛盾。分子学视角将甲壳类与六足类(内口纲和昆虫纲)共有的脑部结构、视神经丛、复眼及腹神经索特征(Strausfeld 2012)解释为同源特征,而六足类与多足类共有的特征则视为趋同特征,其中至少部分特征与陆生习性相关。
系统基因组学已化解了第一代测序技术引发的部分争议,随着数据集规模扩大及系统树推断方法的改进,在许多情况下,形态学异常结果已被形态学一致结果所取代。例如,线粒体基因组学通常推断甲壳动物门与六足动物门存在互为并系群(Carapelli et al. 2007),而如今六足动物单系群的地位已得到确凿重建(Misof et al. 2014)。早期关于内颚六足动物(原尾目、弹尾目和双尾目)与外颚类/昆虫类关系的分子研究反复将原尾目和双尾目归为一类,因其无眼特征而被命名为无眼类(Nonoculata)。尽管基干六足动物的亲缘关系仍存在争议(Dell’Ampio et al. 2013),且部分高覆盖度转录组分析中持续检出无眼类(Lozano-Fernandez et al. 2019b),但其他系统基因组学分析否定了 Nonoculata 分类,转而支持形态学上更一致的分类单元:原尾目与弹尾目共属一类,而双尾目则与外颚亚纲并列(Misof et al. 2014)。
同样,关于冠群节肢动物系统树应以有颚亚门与螯肢亚门之间为根,还是以多足类-螯肢亚门类群(即 Paradoxopoda 或 Myriochelata)为根的激烈争论,现已尘埃落定,结果倾向于前者。多足类与螯肢亚门的吸引关系现被认为源于饱和位点、基于远缘或快速进化外群的根系定位,以及替代模型的不完善(Rota-Stabelli et al. 2011)。因此,当前将化石置于节肢动物冠群深处的尝试,均基于颚足亚纲为单系群的框架,其后三脑节附肢的颚部特征被视为衍征(Edgecombe 2017)。
一项基于 62 个核编码蛋白基因的突破性系统发生分析,通过正式确立若干获得强支持但未被形态学树或传统分类预见的分类群,彻底改变了泛甲壳类系统学格局(Regier et al. 2010)。其中部分分类群在后续转录组数据分析中反复出现,现已被广泛接受(Schwentner et al. 2017, Lozano-Fernandez et al. 2019a)。值得注意的是,泛甲壳动物门内部最深层的分支发生在:包含多数原颚足亚纲物种的寡甲亚纲(Oligostraca),与其余所有甲壳动物及六足动物共同组成的上甲壳动物亚纲(Altocrustacea)之间。寡甲类包含介形虫、颚甲虫以及将短尾鱼虱与五口舌虫联结的类群。
高等甲壳类经多次解析后被划分为多甲壳类与异甲壳类两大类群(Regier et al. 2010, Oakley et al. 2013)。前者将软甲纲与藤壶纲、桡足纲并列。多甲壳类通常被认为与形态学证据不符,因软甲纲动物在神经系统组织上与六足类、螯肢亚门存在潜在共同衍征(Stemme et al. 2012, Strausfeld 2012)。然而,在卤虫幼体发育系列中,下颚后肢发育延迟的模式被单独列为多甲壳类可能的特有衍征(Lozano-Fernandez et al. 2019b)。异甲壳总纲将头甲总纲、枝角纲、颚足总纲和六足总纲联合起来。系统基因组分析驳斥了头甲类与鳃足类间明显虚假的亲和关系(Regier et al. 2010),转而将鳃足类归入鳃足类-六足类支系的姐妹群(Schwentner et al. 2017, Lozano-Fernandez et al. 2019b)。系统基因组学为早期分子分析(如血蓝蛋白序列分析,Ertas et al. 2009)的发现提供了有力佐证:学界长期探寻的六足动物在甲壳类中的姐妹群确为鳃足类(Schwentner et al. 2017, Lozano-Fernandez et al. 2019b)。
关于有颚亚门系统发育的新兴共识在螯肢亚门(Chelicerata)中并未得到呼应,尽管少数深层分支可视为证据充分。当前分子系统发育分析反复显示海蜘蛛(Pycnogoniidae)与真螯肢亚门存在姐妹群关系,这支持了传统观点——颚肢与颚足作为更广泛螯肢亚门群的衍征具有同源性。传统蛛形纲是否构成单系群,以及镰足类(马蹄蟹)是否嵌套于蛛形纲内部(而非两者互为姐妹群),目前尚存争议(Sharma 等 2014,Ballesteros & Sharma 2018,Lozano-Fernandez 等 2019a,Noah 等 2020)。蛛形纲的分类地位(除次生海洋化的螨类及部分古生代蝎类外,其余均为陆生类群)直接影响真颚亚纲海洋-陆地过渡阶段的演化解读。除剑尾目(Xiphosura)问题外,其他众多蛛形纲目间的亲缘关系同样模糊不清——即便针对触肢目等体型微小且常被低采样率的目类,转录组数据已逐步完善(Ballesteros et al. 2019)。