物理量,是指物理学中能够被客观测量、定量表达的物质、系统或过程的属性。在日常生活中,色彩无疑是世间万物最鲜明、最直观的属性之一:熟透的番茄是红色的,晴朗的天空是蔚蓝的,荧光笔划过的重点是醒目的亮黄。
但如果有人向你提出这样一个问题:“描述颜色的物理量是什么?”
最符合直觉的答案往往是波长()或频率()。毕竟高中物理光学章节写得很清楚:可见光是波长在 到 之间的电磁波,红光波长较长,紫光波长较短,太阳光经三棱镜色散后的七色光谱便按波长顺序排列。
然而,只要用两个常见的生活现象稍加推敲,仅靠单一波长来定义颜色的思路就会遇到麻烦。
第一个反例是品红色(Magenta,即洋红色)。如果用三棱镜将太阳光色散成连续光谱,从 的红端一路寻找到 的紫端,光谱中根本不存在品红色。一种在连续光谱中并不存在的颜色,它的波长是多少?
第二个反例就在你此刻注视的这块屏幕上。假设屏幕上显示着一颗鲜黄的柠檬,在自然界中,纯正的柠檬黄对应的单色光波长大约为 。但如果用分光光度计贴近手机屏幕测量,就会发现屏幕根本没有发出 的光,它发出的只有约 的红光和约 的绿光。
既然没有 的电磁波进入眼睛,我们为什么依然看到了黄色?既然单一波长无法涵盖我们眼中的色彩,描述颜色的物理量究竟是什么?
要回答这个问题,我们需要回到近百年前的一场经典光学实验。
一、配色实验:色度图的诞生
在探索如何定量测量颜色之前,物理学家首先需要寻找描述色彩的“基本单元”。
早自 1802 年托马斯·杨(Thomas Young)与后来亥姆霍兹(Hermann von Helmholtz)的混色实验起,学界便已通过经验发现:人类的色彩感知具有三个自由度。只用两束不同颜色的光混合,只能调出极少数色调;而使用三束彼此独立的色光(不能由其中两束合成第三束),就能混合出绝大多数日常可见的色彩。为了尽可能拓宽可调配的色彩范围,这三束基准光需要分别取自可见光谱的长波端(红)、中波端(绿)和短波端(蓝),这便是光学中“三基色(Primary Stimuli)”概念的由来。
那么,如何用这三束基准光去定量标定自然界中的万千色彩?
自然界物体的真实反射光(复色光)通常包含成百上千种不同波长的成分,直接测量复色光无异于大海捞针。但物理学有一条原则——光谱分解与线性叠加:任何复杂的自然光,本质上都是由不同波长的纯单色光叠加而成的。只要测出人眼对 到 之间每一个单一波长(纯单色光)的三基色配比,那么任何自然界复色光的色彩数值,都可以通过将各波长的配比按能量累加(积分)推导出来。
基于这一逻辑,1920’s末,英国科学家莱特(W. D. Wright)和吉尔德(J. Guild)分别独立开展了著名的双视场色彩匹配实验:
- 实验基准的选取: 受试者面对一个分为左右两半的观察视场。左半边依次投射波长已知的纯单色光(测试光,从 逐步扫描至 );右半边则由红(,)、绿(,)、蓝(,)三束单色基准光叠加而成1。
- 视觉等色匹配: 受试者通过调节右侧红、绿、蓝三盏灯的辐射功率旋钮,使右侧混合光与左侧单色光在人眼看来完全一致,并记录此时三束基准光所需的能量数值。
然而,当左侧测试光切换到 至 之间的纯青绿光时,实验陷入了僵局:无论受试者怎样调节右侧绿光和蓝光的比例,右侧混合出的青绿色总是显得发灰、泛白,饱和度始终低于左侧纯净的单色青绿光。
为什么右侧配不出左侧的纯度?因为左侧的 单色光处于单一波长极限,饱和度为 ;而右侧用 的绿光与 的蓝光混合时,这两束光跨度较大,在激发人眼绿、蓝感光通道的同时,还额外触发了一部分红光感光通道的响应——这相当于在青绿光里强行掺入了一点白光,稀释了饱和度。
既然右侧无论如何都无法提高纯度,实验人员采取了一个巧妙的逆向操作:在左侧的纯青绿测试光中,人为掺入一小束红光(),主动降低左侧测试光的纯度,直到与右侧的绿蓝混合光完全一致。
用数学关系式表示,原本无法达成的匹配:
在向左侧加入红光 后达到了视觉平衡:
将 移至等式右侧,便得到了一个在数学上自洽、但在物理上耐人寻味的形式:
这意味着,在以真实红、绿、蓝光为基底的坐标系中,要想定量表示 的纯青绿光,其红色分量必须记为负数(即所谓的“负光”或负三刺激值)2。
当科学家把 到 每个波长所需的 比例连成随波长变化的连续曲线,就得到了 CIE 1931 RGB 颜色匹配函数 。
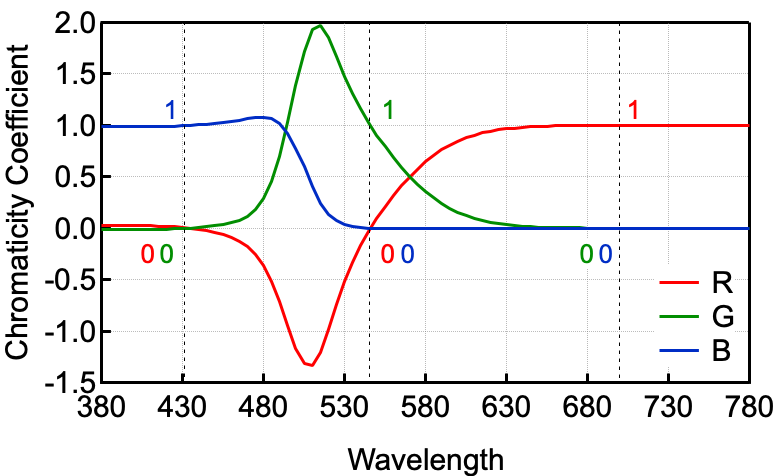 图 1:CIE 1931 RGB 颜色匹配函数曲线。注意红色曲线 在 至 之间跌入了横轴下方(负值区域)。
仔细观察图 1 中的红色曲线 :在 到 区间内,曲线明显跌落到了横轴( 轴)下方。这就是一条典型的带有正负号的函数曲线。
在实际工程中,要计算一束自然复色光(光谱分布为 )的红色刺激总量,工程师需要将光谱曲线 与图中的红色匹配曲线 逐点相乘,再求曲线围成的总面积(即定积分 )。在尚无电子计算机的 1930 年代,积分完全依赖机械求积仪或人工查表累加;函数图像一旦横跨正负两区,计算时就必须频繁切换加减法,不仅繁琐,在工业应用中也极易出错。
为了彻底消除函数中的负值,国际照明委员会(CIE)于 1931 年对原有的 坐标系做了一次纯数学上的线性基底变换(坐标系旋转与缩放),在真实可见光谱的外侧,构造出了三个虚拟的参考原色——3。在这套新基底下,匹配函数 全程大于或等于 ,并且规定 轴的响应曲线严格等于人眼对亮度的敏感度曲线(即 值直接代表光的明暗程度)。
至此,任何一束光进入人眼后的色彩感受,都可以被唯一地表示为三维空间中的一个向量 。
但在很多场景下,我们只关心“这是什么颜色(色相与纯度)”,而不关心“这束光有多亮”。为了剥离亮度的影响,只保留纯粹的色彩特征,CIE 引入了**相对占比(归一化)**的计算方式。设总刺激量为三个分量之和 ,分别计算 在总刺激量中所占的百分比权重,记为色度坐标 :
由于 分别代表三个部分占总体的比例,将三者相加必然等于 :
正因为三者之和恒为 ,只要测出了前两个比例 ,第三个比例 就随之唯一确定,不再提供新的独立信息。通过这一步归一化除法,三维的 颜色空间被垂直投影到了二维的 平面上。
当把 到 的所有单色光计算出 坐标并描点连线,便得到了现代光学的基石——CIE 1931 马蹄形色度图。外围弯曲的马蹄形弧线代表自然界最纯净的单色光(光谱轨迹),底部连接 蓝紫端与 红端的直线,则代表由红光与蓝紫光混合而成的非光谱色——开头提到的品红色,就位于这条底边直线上。
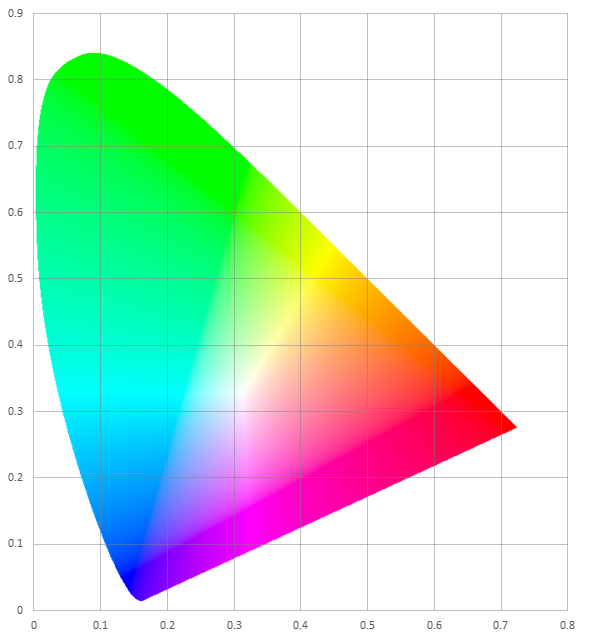 图 2:CIE 1931 xy 色度坐标图. 外侧曲线边界是光谱(单色光)轨迹,波长的单位是纳米。Source: henatips
二、跨学科之问:色度图为啥长这样?
如果你是第一次看到这张马蹄形色度图,你大概率会有一些疑问:
- 为什么色度图是弯曲的“马蹄形”,而不是工整的正三角形?
- 在线性代数中,三维空间 里的任意三个线性无关向量(尤其是互相垂直的正交基底)都可以张成整个空间。我们为什么非要用红、绿、蓝,而不是随便找三束互相垂直的光,比如“黄、青、品红”作为三基色?更换基底后颜色总量会变吗?
有这些疑问非常正常,因为这两个问题的答案不在于数学,而是物理和生理学原理。
第一,为什么色度图是弯曲的马蹄形,而非正三角形?
因为人眼视网膜上的三种视锥细胞——长波敏感(L)、中波敏感(M)、短波敏感(S)——它们的感光吸收光谱并非彼此孤立,而是存在广泛重叠的连续曲线。尤其是负责红黄光的 L 细胞与负责绿光的 M 细胞,吸收峰值仅相差约 。自然界不存在任何一束可见光能够只单独激发 M 绿敏细胞,而完全不触发 L 和 S 细胞。因此,当单色光波长连续变化时,三种细胞的受激向量无法贴着第一卦限的坐标轴边缘走,而是在卦限内部扫出一个光滑外凸的弯曲锥面;截面投影后自然就成了弯曲的马蹄形。
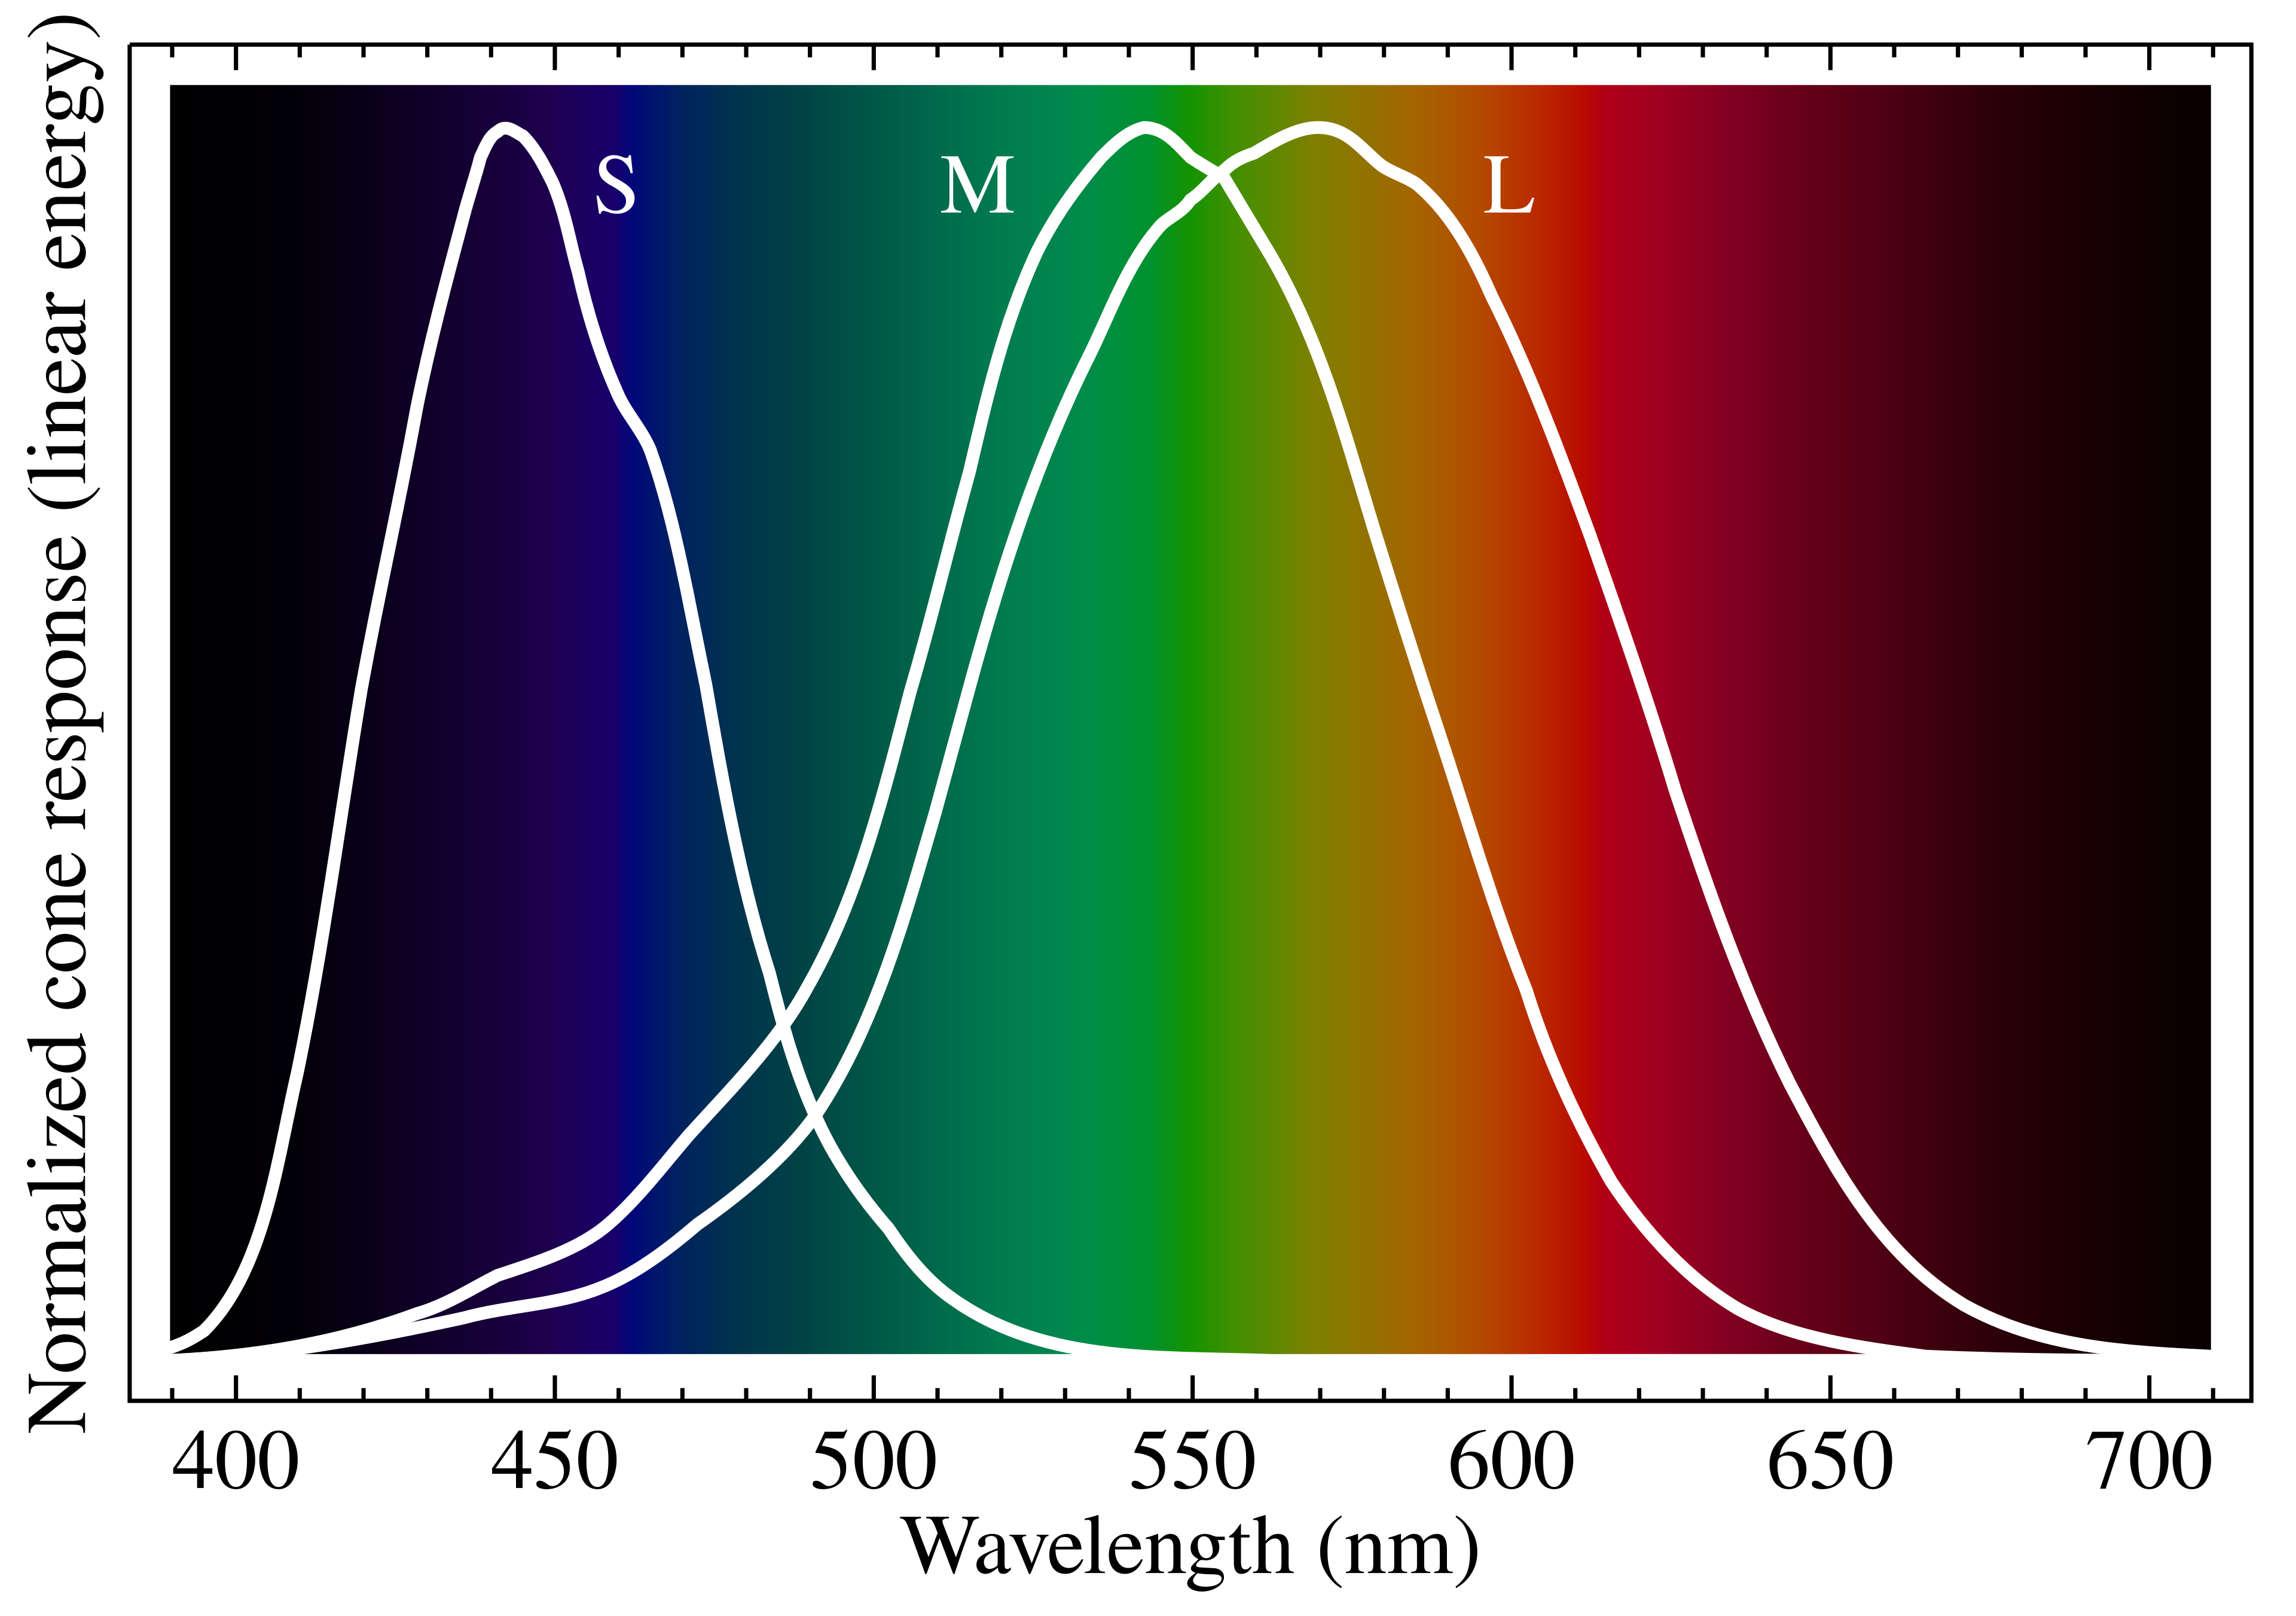 图 3:人类 L、M、S 视锥细胞吸收光谱曲线 Source:Wikimedia Media
第二,为什么不能选用互相垂直(正交)的光向量,或换用“黄、青、品红”作为三基色?
从纯数学角度看,任意基底确实等价;但在物理世界中,更换三基色会导致可合成的颜色总量急剧萎缩。
原因在于,物理发光过程受到一条严格的硬约束:光功率不能为负。发光二极管只能发射光子(组合系数 ),无法发射所谓的“负光子”去抵消已有的光线。在线性代数中,当三个基向量的线性组合系数被限制为非负数时,它们张成的不再是整个三维空间,而仅仅是三维空间第一卦限(First Octant,即三个坐标轴均大于等于 的区域)内部的一个三棱锥(凸锥体,Convex Cone)4。
CIE 1931 色域覆盖对比:极端光谱顶点 vs. 中间基色
EXTREME PRIMARIES (RGB) VS. INTERMEDIATE WAVELENGTHS (CMY) ON 2D LOCUS
事实上,如果读者有过选购显示器的经历,或许还会发现,我们在生活中接触到的显示器发射的三种色光,并不是真正的色度图顶点处的红、蓝、绿纯单色光,而也是处在马蹄形内部的混合光。
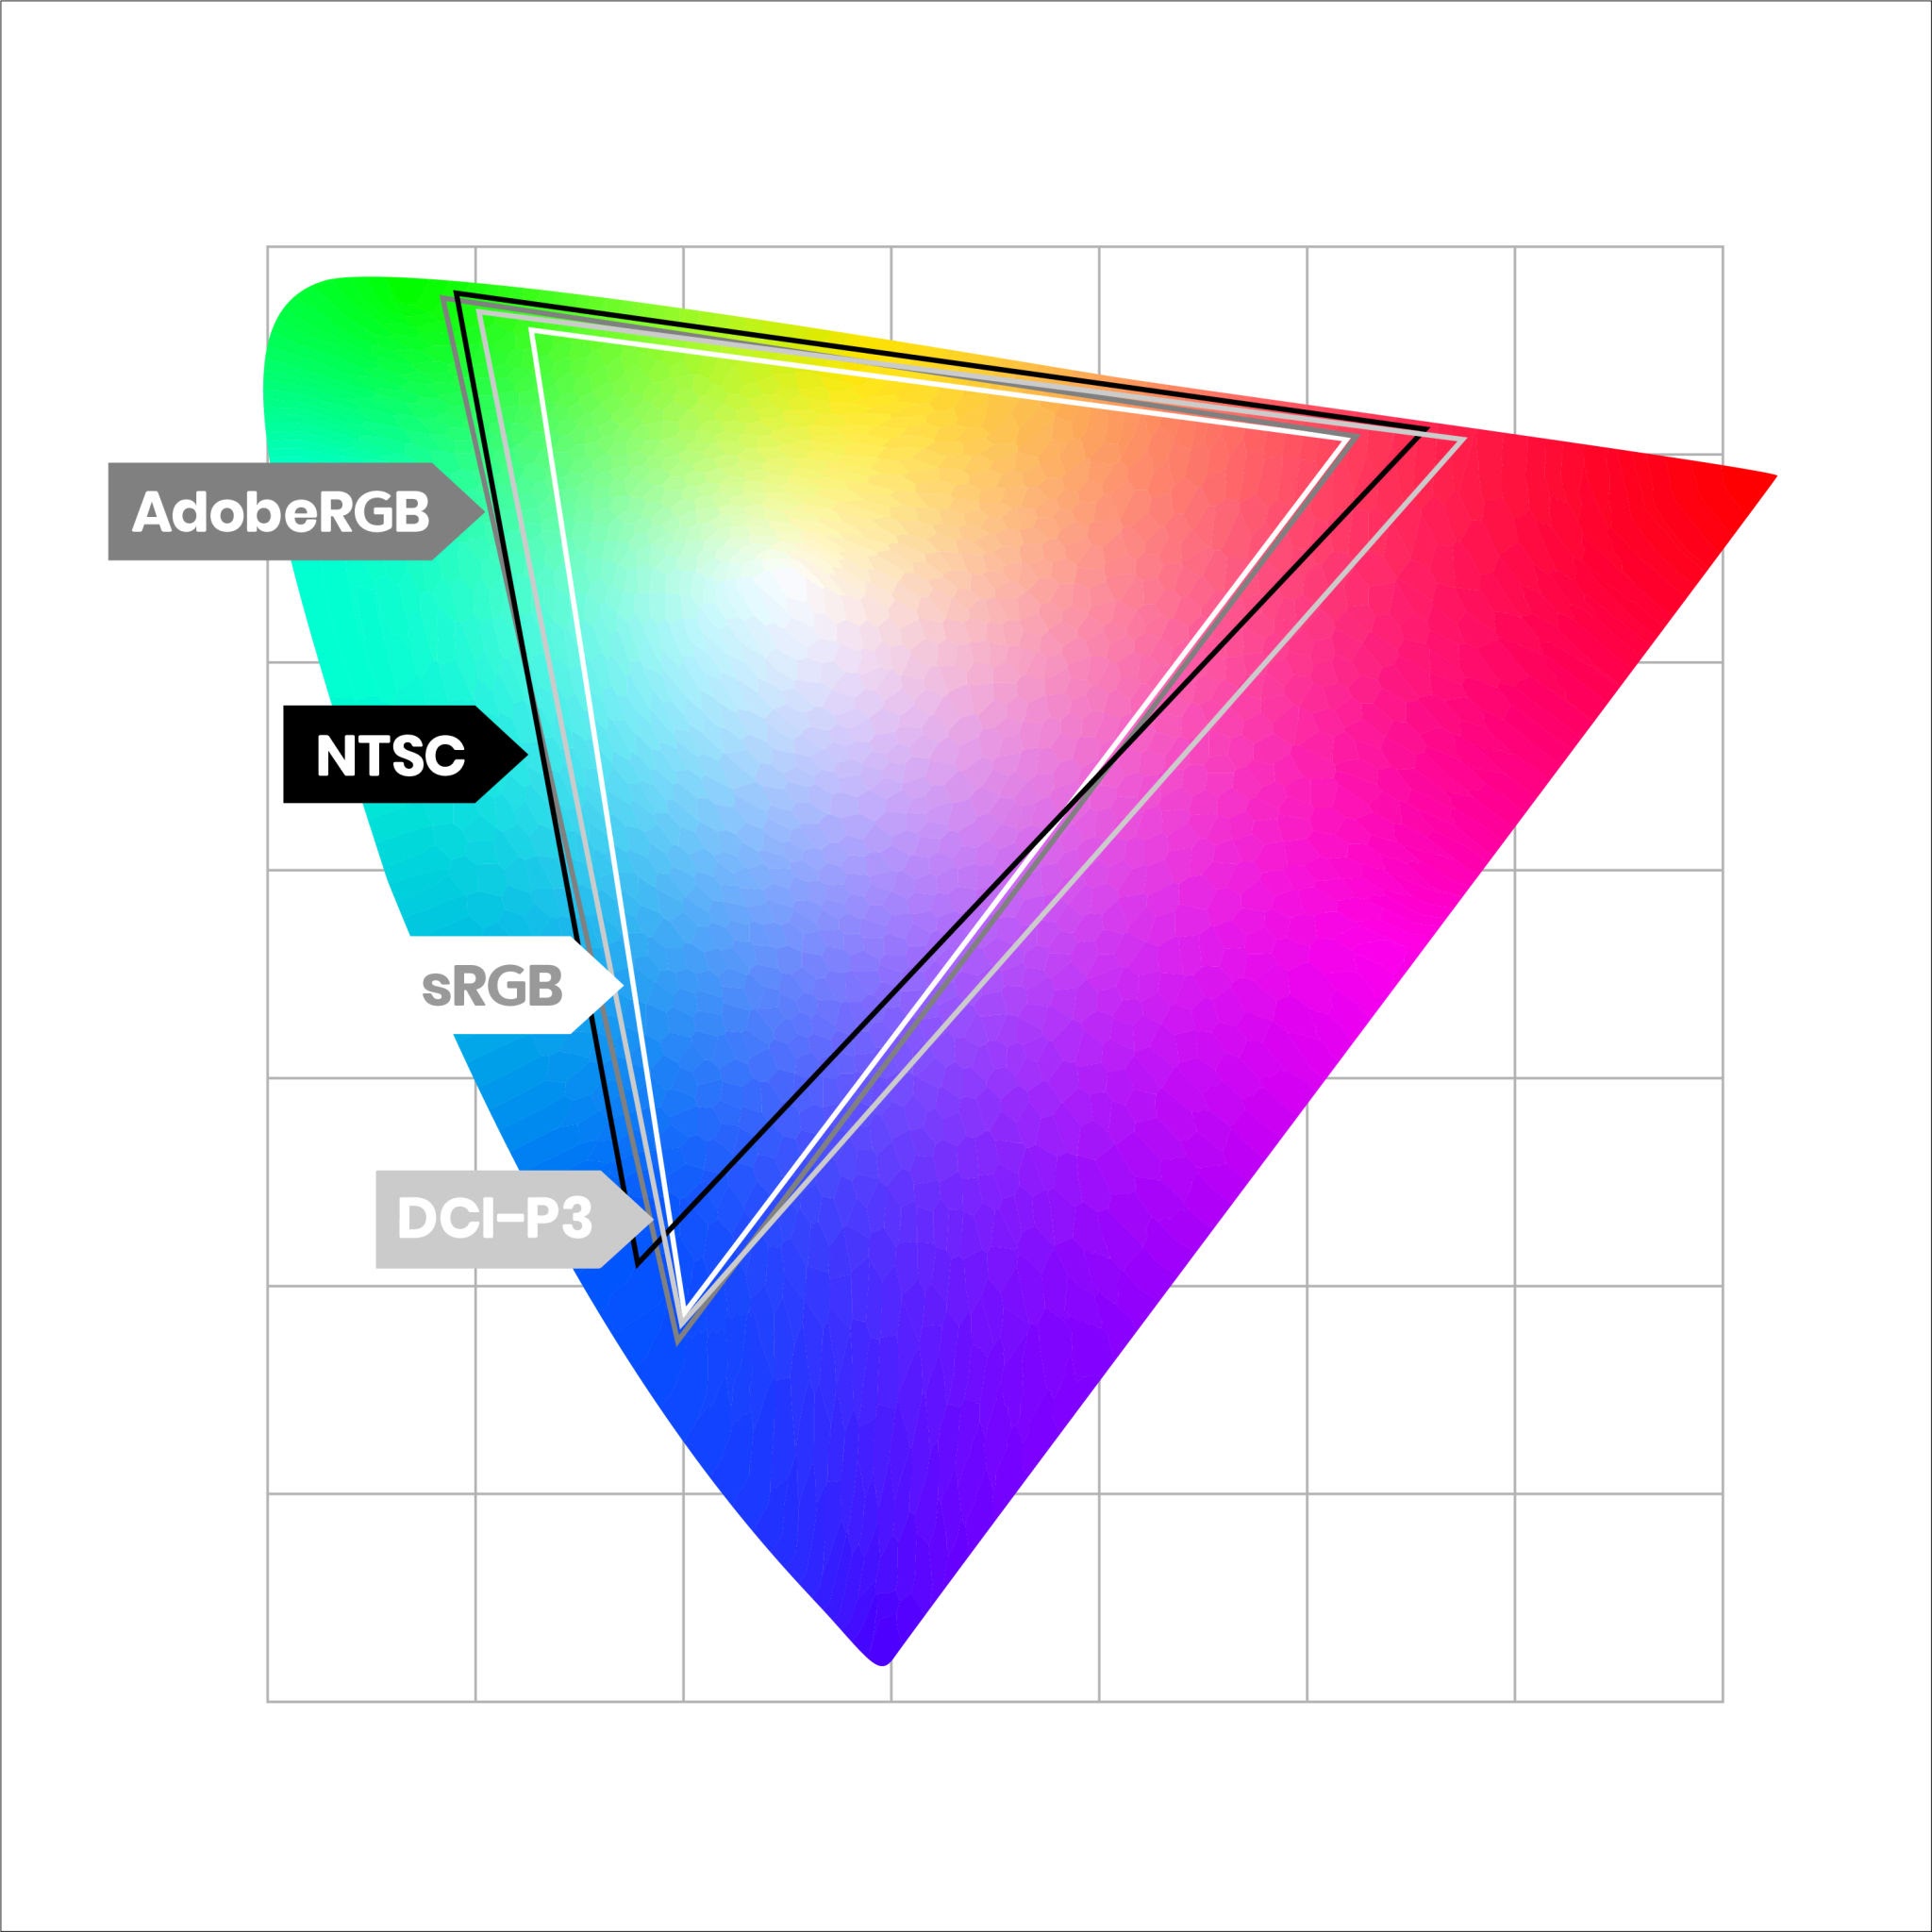 图 4:不同工业色彩空间标准在 CIE 1931 色度图上的色域三角形对比。
既然顶点越靠外色域越大,为什么日常使用的 sRGB、AdobeRGB、DCI-P3 等标准,要把三角形顶点设在马蹄形内部呢5?
这源于物理发光材料与视觉光效的双重妥协。马蹄形的最外圈边缘代表谱宽趋近于 的纯单色光,只有高纯度激光才能打在边缘上;而传统的显像管荧光粉、LED 和 OLED 发出的光都具有一定光谱宽度(半高宽通常在 ),积分后的色度坐标必然向内收缩。此外,人眼对 附近的黄绿光最敏感,越往左上角 的极限翠绿边缘靠拢,人眼的视觉灵敏度下降得越快——为了合成自然界中极少出现的极限单色绿而让显示面板功耗成倍增加,在工程上得不偿失。
下表对比了目前主流色彩空间标准的三基色选点与工程取舍:
| 色彩标准 | 制定年代与主导方 | 绿基色坐标 | CIE 1931 覆盖率 | 光源技术特征与核心应用场景 |
|---|---|---|---|---|
| sRGB / Rec.709 | 1996 (微软 / 惠普) | ~ 35.9% | 基于早期 CRT 显像管荧光粉极限;互联网网页、高清电视通用基准 | |
| AdobeRGB | 1998 (Adobe) | ~ 50.6% | 大幅向青绿方向外推,旨在覆盖印刷工业 CMYK 油墨的青绿色域 | |
| DCI-P3 | 2005 (数字影院联盟) | ~ 45.5% | 匹配数字电影放映机氙灯光谱;现广泛用于高动态范围手机与 OLED 屏幕 | |
| BT.2020 | 2012 (国际电信联盟) | ~ 75.8% | 唯一严格定义在马蹄形边缘的标准( 红、 绿、 蓝纯单色激光) |
三、同色异谱:视觉欺骗与跨物种失效
或许你已经意识到了:红、绿、蓝之所以成为显示工业的通用三基色,并不是因为这三种波长的电磁波在客观物理世界中有什么特殊地位,而是因为它们恰好对应了人类视网膜 L、M、S 三种视锥细胞响应的三个极值锚点。
同理,现代彩色显示工业的底层逻辑,并不是在物理上复刻真实世界的光谱,而是利用人眼将光谱压缩为三维神经信号的生理机制,构造出一套精密的“同色异谱等效(Metamerism)”6。这就解释了文章开头那个“屏幕上没有 的光,为什么我们能看到黄柠檬”的问题。
当真实柠檬反射的 单色光进入人眼时,假设它在 L、M、S 三种视锥细胞上激发的电信号比例为 。显示器并不需要制造 的发光材料,它只需同时点亮 的红色子像素和 的绿色子像素。只要这两束光叠加后,在人类视网膜上同样激发出 的信号输出,大脑视觉皮层就会判定这两种光完全等同。
那么,如果有一只同样具备三色视觉、但三种感光细胞的敏感波长与人类错开了几十纳米的动物(例如蜜蜂,或某种假想的外星三色视觉生物),和人类一起看这台显示器上的柠檬照片,会发生什么?
答案是:在人类眼中逼真还原的照片,在该生物眼中会与真实柠檬呈现出截然不同的颜色。
| 观察对象与视觉系统 | 观察真实柠檬( 连续黄光)的受体响应 | 观察屏幕柠檬( 红 + 绿)的受体响应 | 视觉感知对比结果 |
|---|---|---|---|
| 人类(L: , M: , S: ) | 同色异谱匹配成功:照片与实景颜色完全一致 | ||
| 假想三色视觉生物(受体峰值分别偏移 ) | 等效彻底失效:屏幕柠檬呈现严重偏红的失真色彩 | ||
| 四色视觉鸟类(UV: + S, M, L 窄带受体) | 缺失紫外维度且比例失调:画面暗淡且完全失去紫外纹理 |
如上表所示,显示器发出的 与 两道离散光谱尖峰,是严格按照人类视锥细胞的函数曲线计算配比的。一旦观察者的感光曲线峰值或宽度发生改变,积分出来的信号比例就会大幅偏离真实 光谱的激发效果。
在自然界中,鸟类便是这一现象最典型的见证者。绝大多数鸟类拥有第四种专门感知近紫外线的 UV 视锥细胞,属于**四色视觉(Tetrachromacy)**生物。许多鸟类羽毛的求偶斑纹与植物果实都会反射紫外线,而人类的 RGB 显示器既没有紫外发光像素,屏幕表面的铝硅酸盐玻璃也阻挡了紫外波段。因此,人类觉得色彩饱满的自然纪录片,在鸟类眼中不仅缺失了一整个色彩维度,连原有的红绿混色比例也是失真的。
如果要为鸟类专门设计一台能够真实还原实景的显示器,除了需要将面板基材更换为高透紫外的石英玻璃、将刷新率提升至 以上(鸟类的临界闪烁融合频率远高于人类的 ,普通屏幕在鸟眼中有如频闪灯),还必须构建包含红、绿、蓝与近紫外的四基色像素系统(RGB-UV)。
此时,不妨想想四基色的色度图是什么形状。
根据归一化降维规律():人类有 种视锥细胞,剥离亮度后得到二维平面上的马蹄形色度图;鸟类有 种视锥细胞,剥离总亮度后(),剩余 个独立自由度。因此,四基色的色度图不再是平面图形,而是一个三维立体几何体——“色彩四面体(Color Tetrahedron)”7。四个顶点分别代表纯粹激发 UV、S、M、L 四种受体的极限状态,而单色光谱轨迹则化作一条在四面体内部盘旋上升的三维空间曲线。
四、演化的权衡:动物界的色觉维度分布与生存策略
当我们把视野扩展到整个动物界时,会发现一个有意思的演化事实:在脊椎动物中,鸟类、爬行动物和大多数硬骨鱼类所拥有的“四色视觉”才是占大多数(约 )的;而包括人类在内的哺乳动物,反而是经历了一场曲折的退化与重塑。
数亿年前,脊椎动物的硬骨鱼类共同祖先就已经具备了完整的 类视锥视蛋白基因。然而在中生代恐龙占据优势生态位的一亿多年间,早期哺乳动物祖先大多转向夜间或地下活动。在漫长的“夜行瓶颈(Nocturnal Bottleneck)”中,为了将有限的视网膜空间让给对弱光极其敏感的视杆细胞,哺乳动物丢失了其中两类视锥蛋白,色觉从四维退化到了二维。直到今天,猫、狗、马、牛、鹿等绝大多数非灵长类哺乳动物,依然生活在缺少红绿区分能力的二色视觉世界中。
人类之所以拥有三色视觉,源于约 3000 万至 4000 万年前旧大陆灵长类祖先的一次基因演化事件:其 X 染色体上的长波视蛋白基因发生了复制与随后的点突变,由原本单一的中长波通道分化出了峰值极为接近的 L(红)和 M(绿)两个通道。这一演化不仅帮助树栖灵长类在绿色树冠中快速识别成熟的红黄色果实,也直接解释了为什么人类的 L 和 M 感光曲线重叠度如此之高,以及为什么伴 X 隐性遗传的红绿色盲在人类群体中如此常见。
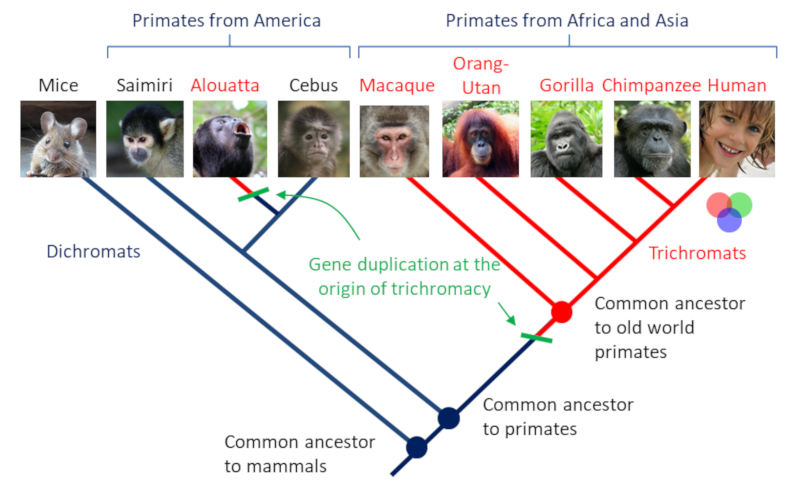 图 5:部分灵长类动物的系统发育树及其与双色视觉或三色视觉的关系 Source:encyclopedie-environnement.org
| 色觉维度 | 代表性动物类群 | 占已知动物物种比例(估算) | 核心演化背景与神经处理策略 |
|---|---|---|---|
| 单色视觉 (1D) | 深海鱼类、鲸豚类、海豹、少数夜行啮齿类 | ~ 3% – 5% | 适应极端弱光或深海窄谱环境,完全舍弃色觉以换取最高光子捕获灵敏度 |
| 二色视觉 (2D) | 绝大多数非灵长类哺乳动物(犬、猫、牛、马) | ~ 8% – 12% | 受中生代“夜行性瓶颈”影响丢失两类视蛋白,色度图退化为一维线段 |
| 三色视觉 (3D) | 人类与旧大陆灵长类、蜜蜂与多数传粉膜翅目昆虫 | ~ 12% – 18% | 灵长类通过基因复制重获红绿分辨力;蜜蜂则采用“紫外-蓝-绿”三通道识别花蜜导引线 |
| 四色视觉 (4D) | 绝大多数鸟类、爬行动物、大多数浅水硬骨鱼类 | ~ 65% – 70% | 继承脊椎动物祖先完整的四套视蛋白基因,并借助视锥细胞内的彩色油滴实现窄带滤波 |
| 超多维视觉 (5D–16D) | 凤蝶(5–6色)、蜻蜓(11–30种视蛋白)、螳螂虾(12–16色) | ~ 1% – 3% | 放弃复杂的大脑跨通道比值运算,采用多通道窄带滤光实现毫秒级特征识别 |
看到表格的最后一行,你可能会好奇:像雀尾螳螂虾这样拥有 到 种感光受体的生物,它们眼中的色彩世界岂不是丰富到了极致?
2014 年发表于《Science》的一项行为学实验给出了相反的结论:螳螂虾分辨相近波长的能力反而远逊于人类8。人类可以轻易察觉波长相差 的颜色变化,而螳螂虾甚至无法区分波长相差 的两束光。
为什么拥有 维感光硬件,色彩分辨力反而如此粗糙?
这揭示了生物演化中大脑算力与反应速度的权衡。人类虽然只有 种宽波段受体,但依靠庞大的大脑视觉皮层,实时对 L、M、S 三个通道的信号做精细的跨通道比值解算(拮抗编码),用神经算力换取了分辨数百万种渐变色的能力。而螳螂虾的脑容量极小,其捕食足的弹射出击速度却高达 ,在瞬息万变的近距离搏杀中,它的神经系统既没有算力、也没有时间去解算 维向量的比值。
因此,螳螂虾演化出了一套硬件直通策略:将 种受体配合滤光色素修剪成 个互不重叠的窄带探头,平铺在 (近紫外)到 (深红)之间。当猎物或同类的反射光进入复眼时,不需要大脑做减法或比值运算,哪一个波段的探头被点亮,信号便直接触发下游运动神经元。它舍弃了对细腻渐变色的感知,换取了零延迟的生存反应速度。
尾
回到文章标题的那个问题:《描述颜色的物理量是____?》
梳理完从配色实验、三基色到演化生物学的脉络后,我们会发现,这个问题之所以难以用一个简单的名词作答,是因为问题本身隐含了一个不够严谨的前提——它默认“颜色”像质量()、电荷量()或热力学温度()一样,是不依赖观察者而独立存在的纯客观物理属性。
在纯粹客观的物理世界里,空间中传播的只有静止质量为零、携带着量子化能量 的规范玻色子——光子(Photon);在宏观光学层面,客观存在的也只有连续的光谱功率分布 。
脱离了感知系统,客观的宇宙本身并没有颜色,只有不同能量与通量的光子流。
只有当客观的光谱 穿过介质,投射到某一个具体生物的视网膜上,与特定数量、特定吸收曲线的视蛋白发生光化学反应,并被降维编码为一组神经电信号时,“颜色”才真正诞生。因此,在现代科学体系中,颜色并非纯粹的客观物理量,而是连接客观辐射与主观感知的“心理物理量(Psychophysical Quantity)”:
- 在纯物理刺激源层面,决定色彩潜力的基础物理量是光谱功率分布 ;
- 在工业测色学层面,结合人类标准观察者模型后,描述颜色的量是三刺激值向量 或色度坐标 ;
- 在视觉感知层面,它则表现为**色相(Hue)、饱和度(Saturation)与明度(Lightness)**三个维度。
甚至在人类群体内部,由于视蛋白基因的多态性,不同个体 L 视锥细胞的吸收峰值也存在着 的细微差异。面对同一束极窄谱宽的激光,你眼中的“纯白”,在旁人眼中或许就略微偏暖或偏冷。
可以说,颜色并非物体固有的客观标签,而是光与生命共同塑造的感知映射。
1931 CIE RGB 基准波长的工程来源: 莱特与吉尔德在实验中最终标定的三基色波长(、、)并非随意拼凑。其中 (绿)和 (蓝)是**汞蒸气放电灯(Mercury Vapor Lamp)**两条强度极高、极其稳定的特征发射谱线,便于全球各地的光学实验室在缺乏高精度单色仪的条件下精确复现; 则位于长波红光末端,在此波段附近人眼色度响应随波长变化极慢,滤光片轻微的波长误差不会影响实验精度。 ↩︎
格拉斯曼定律与负三刺激值的严格表述: 设任意单色光刺激为 ,基准三原色单位向量为 。根据格拉斯曼叠加定律,当给测试光掺入数量为 的红光后与绿蓝混合光达到视觉等效(记为 )时,有 。在向量空间中移项可得 ,其中 即为该波长下的红色光谱三刺激值。 ↩︎
从 CIE RGB 到 CIE XYZ 的线性变换矩阵: 为消除负值并令 轴严格对应人眼明视觉光视效率函数 ,CIE 定义了如下非奇异线性变换矩阵:
由于变换矩阵将坐标轴推到了真实光谱轨迹外侧,逆变换回物理光空间时,单位向量 均包含负能量光谱成分,因此被称为“虚原色(Imaginary Primaries)”。 ↩︎
凸锥(Convex Cone)与单纯形色域: 在实向量空间 中,子集 若对任意 及非负实数 均满足 ,则称 为凸锥。物理光源受辐射能量非负限制(),任意三基色 所能合成的颜色集合为 。当与归一化平面 相交时,该三棱锥的截面即为一个二维三角形(2-Simplex)。 ↩︎
主流工业色彩空间标准(sRGB / AdobeRGB / DCI-P3 / BT.2020): sRGB(Standard RGB): 1996 年由微软与惠普联合制定,其三基色色度坐标直接取自当时普及率最高的 CRT 显像管 P22 荧光粉的发光参数,旨在让不同显示器无需复杂校准即可呈现一致的网页色彩。 AdobeRGB (1998): 由 Adobe 公司制定,专门将绿基色坐标从 sRGB 的 大幅推向 ,目的是在屏幕上完整预览商业印刷(CMYK)油墨所能印出的高饱和度青绿色。 DCI-P3: 由好莱坞数字影院倡导联盟(DCI)制定,色域面积比 sRGB 大约 ,强化了红、绿表现力;苹果公司在此基础上将白点修正为 D65,衍生出消费电子广泛采用的 Display P3 标准。 ITU-R BT.2020(Rec.2020): 国际电信联盟为 4K/8K 超高清电视制定的标准,其三基色直接定义为 、、 三束纯单色光,色域完全触及马蹄形边界,目前主要由三色纯激光投影与顶级量子点技术逼近实现。 ↩︎
同色异谱(Metamerism)的线性算子解释: 设光谱功率分布函数属于无穷维希尔伯特空间 ,人眼视锥细胞积分响应相当于一个从无穷维空间向三维欧氏空间 映射的线性算子 。根据秩-零化度定理(Rank-Nullity Theorem),从无穷维投影到三维必然存在无穷维的零空间 。对于任意非零函数 ,光谱 与 物理波形不同,但映射结果完全相同,即构成一对同色异谱光。 ↩︎
四色视觉的色彩四面体(Color Tetrahedron)坐标转换: 在鸟类色度学模型中,设四种视锥细胞归一化后的相对刺激比例为 (满足 )。可通过重心坐标变换将其映射至三维笛卡尔坐标系 :
其中 对应四通道等量激发的三维中心白点。 ↩︎
Thoen H H, How M J, Chiou T H, et al. A different form of color vision in mantis shrimp[J]. Science, 2014, 343(6169): 411-413. ↩︎
读者留言
最新在前